完全不依赖CRISPR的新诊断平台!
评论 (0)
- 还没有评论,来抢第一楼。
基于核酸的诊断技术能够对多种病原体、疾病相关生物标志物进行高度特异性的检测。CRISPR相关(Cas)酶是核酸诊断中一种代表性检测策略。靶标识别后可以通过旁切活性持续切割报告探针,从而把一次识别事件转化成强烈荧光信号,结合RPA或LAMP等扩增方法,能够实现对核酸的高灵敏度高特异性检测。但由于旁切作用相对不具选择性,一旦多个检测靶标放在同一管反应中,不同Cas反应之间容易互相干扰,因此CRISPR的高重数检测往往需要复杂的方法设计。
近日,一组来自波士顿大学的科研团队在杂志 ACS Sensors 上发表了一篇题为 “Multiplexed Nucleic Acid Detection Using Sequence-Specific Cleavage Mediated by Repair Endonucleases” 的文章。作者提出了一种完全不依赖CRISPR的新平台——TIMBER。TIMBER将参与DNA损伤修复的内切酶改造成分子诊断识别元件,只有当含有碱基缺失的探针与靶序列形成双链后,内切酶才会切断探针并产生荧光。靶分子本身不被破坏,可以继续进入下一轮探针结合和切割。平台在无扩增条件下LoD为 12 pM,结合RT-PCR或RT-LAMP后可达到 1 copy/μL(1.6 aM),并可进一步扩展到可视荧光、侧向层析以及四重EGFR基因分型。
图片来源:ACS Sensors
TIMBER检测原理概述
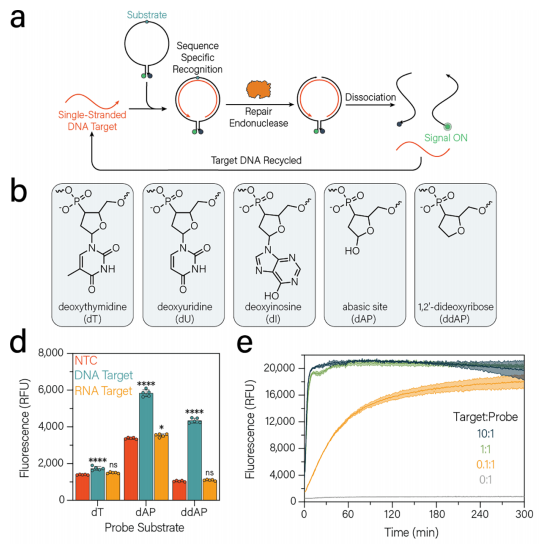
TIMBER利用的是修复内切酶对损伤碱基的识别。作者在分子探针中加入一个1′,2′-二脱氧核糖碱基位点(ddAP)。当探针处于单链状态时,修复内切酶不识别这个异常位点。当探针与互补目标DNA杂交形成双链,ddAP被内切酶识别并 在探针上切割,恢复荧光。在此过程中,目标DNA不会被切断,一个靶分子能够重复触发多轮探针切割反应。实验结果表明,即使靶标远少于探针,反应也能接近最大荧光水平。这种方法的信号放大机制与CRISPR不同,激活后的Cas是随机切割探针,而TIMBER是特异靶标使匹配探针逐轮进入可切割状态。
TIMBER检测原理
图片来源:ACS Sensors
TIMBER检测的优化
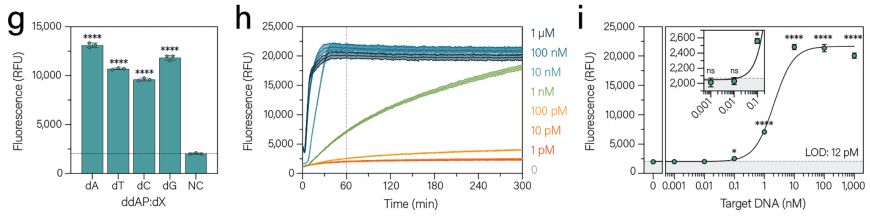
作者比较了dU、dI、天然缺失碱基位点 和ddAP等多种底物,以及多种修复内切核酸酶,最终发现Thermus thermophilus endonuclease IV + ddAP探针组合在双链状态下活性明显,同时单链时背景又相对较低。天然碱基缺失位点也可以被切割,但本身更容易发生自发断裂,背景荧光较高。反应温度为55℃,最佳杂交区域长度约25–33 nt。单独使用TIMBER、反应1小时后,合成DNA靶标的LoD为12 pM。
作者测试了所有位置的碱基替换后,发现修复内切酶对ddAP上游约3–5 nt的区域最为敏感, 其中−5位最适合做单核苷酸变异区分。因此作者把EGFR T790M 位点设计到ddAP上游−5位置。面对合成的T790M和对应WT序列时,匹配的靶标产生明显更强信号,因此这套体系可以通过探针结构设计获得区分SNP的能力。
TIMBER的测试与优化
图片来源:ACS Sensors
TIMBER与等温扩增技术的整合
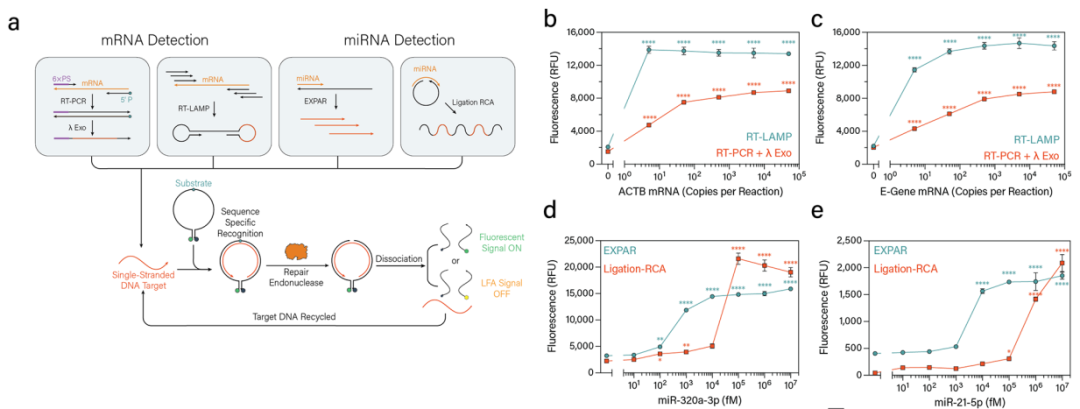
作者研究了TIMBER是否可以与核酸扩增方法结合来提高灵敏度。TIMBER检测需要单链DNA靶标,因此对于mRNA靶标,其中一条引物经硫代磷酸修饰保护,另一条引物携带 5′磷酸基团,进行 RTPCR之后,产物经 λ 核酸外切酶处理后,可得到单链 DNA。RT-LAMP则直接利用扩增产物中的单链loop区域。通过这两种方式,ACTB mRNA和SARS-CoV-2 E的检测限都可以低至 1 copy/μL (图b和c) 。
对于 miRNA 靶标检测,作者采用了EXPAR与连接介导的滚环扩增(ligation-based RCA)。EXPAR 可直接生成单链产物,便于 TIMBER 探针识别结合。而ligation-based RCA能够合成长单链 DNA,其上包含大量靶序列拷贝。结果显示,EXPAR 对 miR-320a-3p 的检出限低至100 fM,ligation-based RCA 的检出限为100 pM (图 d) 。针对 miR-21-5p,EXPAR 与ligation-based RCA 分别可达 10 pM 和 1 nM 的检出限 (图 e) 。
TIMBER与等温扩增技术的整合
图片来源:ACS Sensors
TIMBER在低资源环境中的应用
作者对TIMBER在低资源环境中的应用做了评估。首先把RT-LAMP和TIMBER进行整合,RT-LAMP在65℃扩增30 min,再转移到55℃ TIMBER反应30 min,肉眼即可观察荧光 (图g) 。TIMBER探针还可改造成FAM/biotin和FAM/digoxigenin双标记形式,使用侧向层析检测进行读取。靶标存在时探针会被切断,因此test line消失代表阳性 (图h) 。在完整流程中,RT-LAMP 30–35 min、TIMBER约30 min,LFA约5 min,最快总时间接近1小时。
作者使用64份SARS-CoV-2唾液样本做了初步临床验证,其中32份阳性(整体属于较高病毒载量)、32份阴性。样本只经过98℃ 2 min热处理、1:4稀释,然后直接RT-LAMP,再进入TIMBER-LFA。结果显示,32个阳性和32个阴性全部正确分类,对应敏感性 100%、特异性 100%。
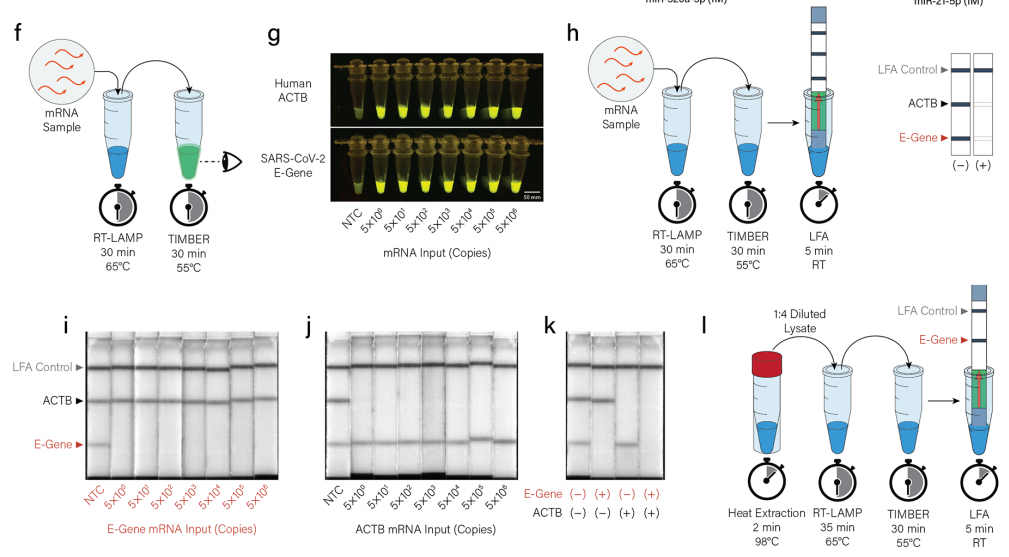
TIMBER在低资源环境中的应用
图片来源:ACS Sensors
肺癌样本EGFR突变的TIMBER多重检测
作者随后在人体样本中验证TIMBER的多重检测和单核苷酸多态性(SNP)检测能力。作者设计了一个四重TIMBER检测面板,分别靶向野生型和T790M突变型EGFR,以及外显子19参考位点和外显子19中Ex19del缺失。每个靶标均通过独立通道进行读取。T790M和T790 WT探针可直接报告突变型和野生型等位基因,而外显子19缺失探针在野生型样本中其信号较强,当该区域缺失时信号消失。
作者测试了 6份已知EGFR突变的gDNA和6份WT样本。样本经PCR 30个循环后,再经λ外切酶生成单链产物,并加入四重TIMBER体系。最终T790M和Ex19del的判定与参考qPCR保持一致,TIMBER荧光与qPCR 结果的Pearson相关系数分别达到 0.98和0.95 (图d和e) 。
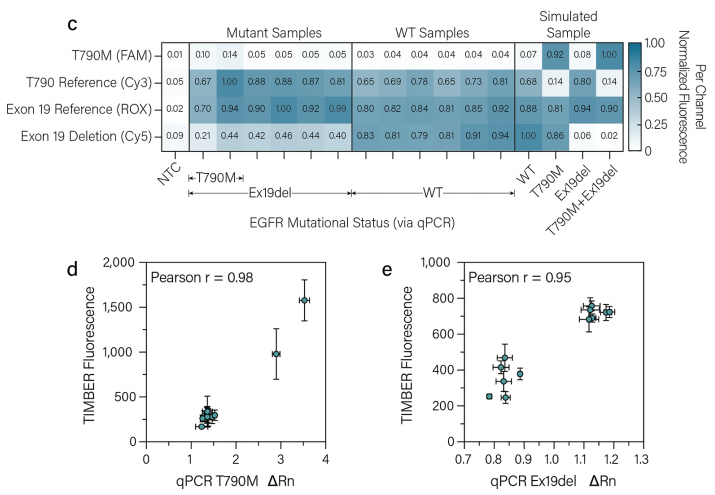
四重TIMBER同时区分EGFR T790M、T790 WT、Exon 19
参考区域和Ex19del
图片来源:ACS Sensors
作者提出了一个非CRISPR核酸检测框架。TIMBER利用Tth endonuclease IV只在ddAP探针与匹配靶标形成双链后才进行切割,靶分子本身不被消耗,因此能够循环触发多轮反应。单独使用时LoD为12 pM,配合RT-PCR或RT-LAMP后可达到1 copy/μL。通过把SNP放在ddAP附近最敏感的错配位置,TIMBER可以区分单碱基突变。作者进行了四重EGFR检测,同时判读T790M、WT和Exon 19 deletion,并与qPCR结果高度一致。因此,TIMBER提供了一种没有旁切活性的序列特异读出方法,在多重化、低仪器读出和SNP识别方面很有潜力。
但这篇文章也有一定的局限性。TIMBER需要单链DNA 作为有效输入,而Cas12a可以直接读取dsDNA,这个单链前处理会增加流程复杂度。另外,TIMBER目前是两步开管体系,先RT-LAMP,再把产物转入TIMBER。另外,探针设计对GC含量和二级结构非常敏感,可能会有非特异性切割,因此每个新靶标都需要较充分的序列优化。总之,这篇文章说明了,除了CRISPR,DNA修复酶也可以被重新工程化成高特异分子诊断元件。 如果后续能够做到不依赖单链DNA,并能够单管、降低探针设计的要求,TIMBER可能会成为CRISPR之外一条很有竞争力的核酸检测技术路线。
注: 本文内容仅供行业动态参考,不构成任何投资建议或临床医疗决策依据。
原文来源:小桔灯网(本站仅作摘要与索引,版权归原网站所有)
同类文章
- 辅仁大学附设医院拟研究胃部线状取样结合抗原快检2026-11-07
- 单反应全谱系拉沙病毒RT-PCR的诊断准确性研究2026-11-05
- 个人PCR分析仪助力家庭传染病检测2026-11-03
- 新加坡教授利用宏基因组测序识别空气中的微生物2026-11-03
- PANDAA拉沙热病毒RT-PCR检测方法在塞拉利昂的临床评估2026-11-03
- ART:固相免疫传感器端到端设计的组成物理理论2026-10-30